- 移动端

北京百普赛斯生物科技股份有限公司品牌商
14 年
手机商铺
- NaN
- 0
- 0
- 2
- 2
推荐产品
公司新闻/正文
谷氨酸:大脑的“信使”,还是神经的“毒药”?
3706 人阅读发布时间:2026-10-30 16:16
谷氨酸(glutamate)是中枢神经系统最主要的兴奋性神经递质,介导快速突触传递。然而,谷氨酸并非只具有生理活性,当胞外谷氨酸稳态失衡时,同一分子可触发兴奋性毒性(excitotoxicity),成为中风、阿尔茨海默病(Alzheimer's disease, AD)、多发性硬化等疾病的共同病理机制。理解谷氨酸从生理信号到病理毒性的转换,是开发神经保护疗法的关键前提——而能否获得高度还原人源谷氨酸病理过程的模型系统,则是转化成功的核心瓶颈。
在正常生理状态下,谷氨酸能信号通过两大受体家族发挥作用:离子型受体(AMPAR、KAR、NMDAR)介导快速突触传递;代谢型受体(mGluR1–8)通过G蛋白通路进行慢调节[1,2]。该信号通路在调控突触可塑性(如长时程增强,LTP)、维持学习与记忆等关键神经功能中发挥核心作用[3]。
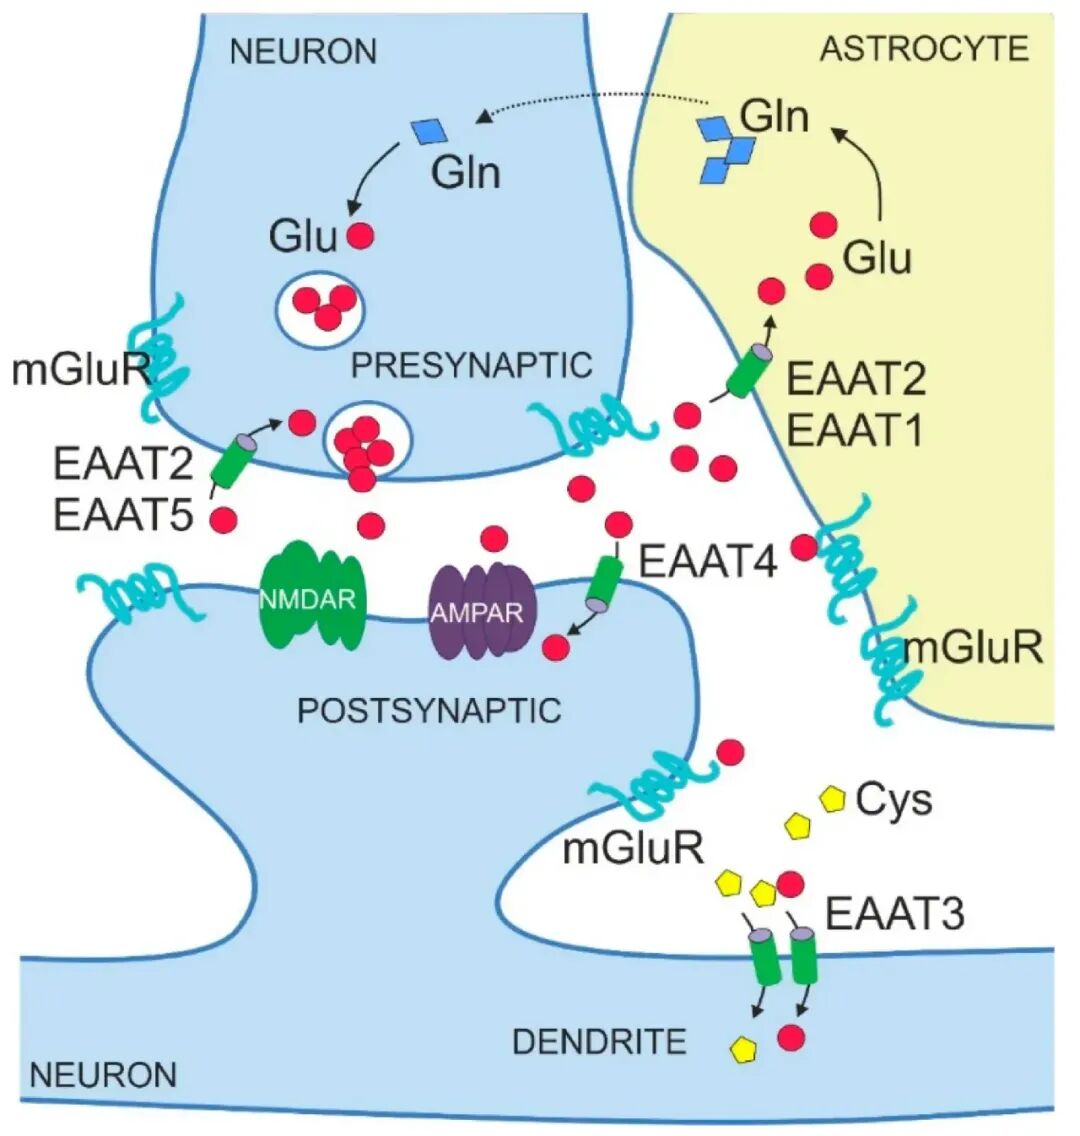
谷氨酸稳态示意图
谷氨酸能够作为神经递质发挥作用,一个重要前提是:细胞外谷氨酸浓度必须受到严格控制。谷氨酸从突触前末梢释放后,需要被迅速从细胞外空间清除,以限制受体激活的时间和空间范围。这一过程由兴奋性氨基酸转运体(excitatory amino acid transporters, EAATs)主导,尤其是表达于星形胶质细胞的EAAT1/GLAST 和 EAAT2/GLT-1,承担主要的谷氨酸清除任务,并参与神经元与星形胶质细胞之间的谷氨酸-谷氨酰胺循环。一旦该稳态系统受损——转运体下调、能量衰竭时转运方向逆转或星形胶质细胞病理改变——胞外谷氨酸即可从信号分子转变为神经毒性分子[4]。
NMDAR因兼具电压依赖性Mg²⁺阻滞和高Ca²⁺通透性,在突触可塑性和兴奋性毒性中均处于核心位置[1,2]。兴奋性毒性的起始事件是NMDAR过度激活导致的胞内Ca²⁺超载。
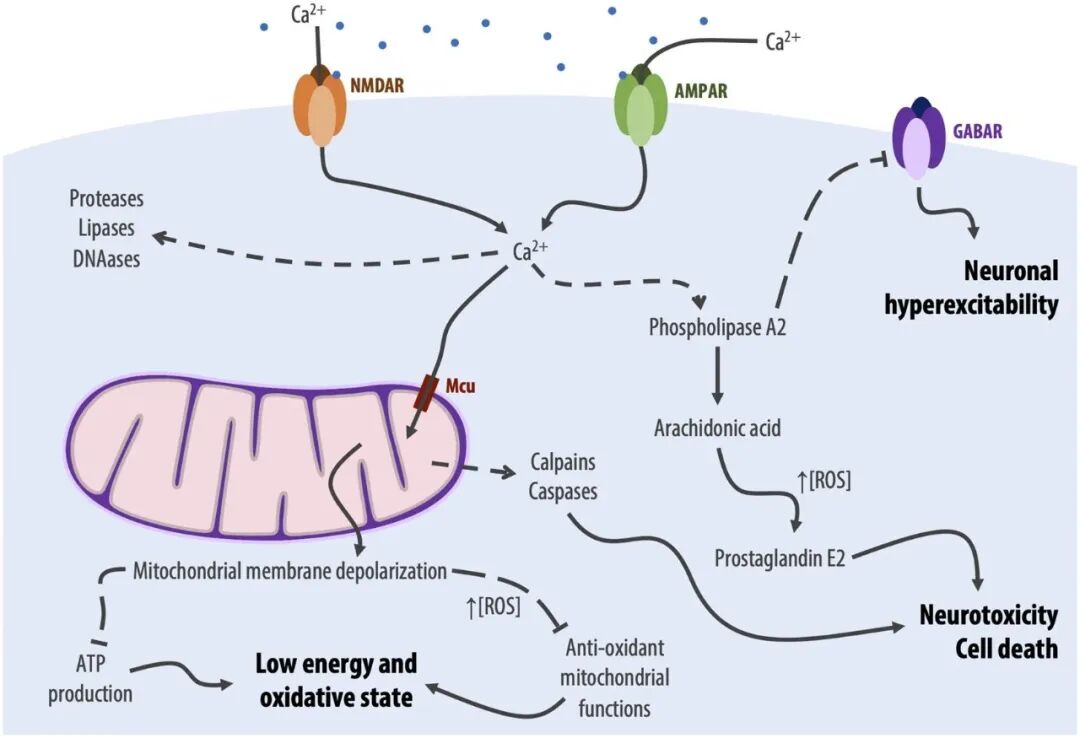
兴奋性毒性(excitotoxicity)示意图
核心毒性分子通路可划分为以下三个阶段:
-
受体持续激活与膜去极化:持久的高浓度谷氨酸过度激活突触后膜的NMDAR与AMPAR,导致大量Ca²⁺和Na⁺从胞外快速内流,破坏神经元的离子稳态并引发膜持续去极化[4]。
-
线粒体功能障碍与氧化应激:胞内Ca²⁺浓度异常升高,超过线粒体的缓冲能力,导致线粒体膜电位(ΔΨm)崩溃,线粒体通透性转换孔(mPTP)开放,抑制三磷酸腺苷(ATP)的合成。同时,线粒体呼吸链损伤促使活性氧(ROS)爆发性生成[4, 5]。
-
酶系异常激活与细胞死亡通路启动:高浓度Ca²⁺激活钙蛋白酶(Calpain)、磷脂酶A2(PLA2)及神经元型一氧化氮合酶(nNOS),导致细胞骨架蛋白降解、膜脂质过氧化,并促进过氧亚硝酸盐(ONOO⁻)等毒性自由基的生成。上述效应协同作用,最终导致神经元的急性坏死或迟发性凋亡[4, 5]。
近年研究的重要突破是识别出突触与突触外NMDAR的功能差异:突触内受体(以GluN2A为主)激活可启动与CREB、BDNF等相关的神经保护和可塑性信号,而过度激活突触外受体(以GluN2B为主)则触发促死亡通路[6]。这一发现部分解释了为何非选择性NMDAR阻断在临床中屡屡失败——它同时阻断了生理功能与病理毒性。美金刚(memantine)作为优先阻断突触外受体的非竞争性拮抗剂,已获批用于中重度AD,为突触外受体靶向策略提供了初步的临床概念验证[7]。但也有研究表明“突触NMDAR保护、突触外NMDAR损伤”并不是绝对的二分模型。突触外NMDAR也具有正常生理功能,神经毒性还受到受体亚型、激活强度、持续时间以及突触和突触外受体共同激活程度等因素影响[8,9]。
缺血性中风是急性兴奋性毒性的典型场景:在脑组织缺血缺氧状态下,氧气和葡萄糖供应中断导致ATP迅速耗竭,能量衰竭引发谷氨酸大量释放。同时,细胞膜上的Na⁺/K⁺-ATP酶功能停滞,引发膜去极化,谷氨酸转运体反向转运,导致细胞外谷氨酸浓度在短时间内剧增数十倍,引发大面积神经元兴奋性毒性死亡[5]。在缺血半暗带,兴奋性毒性则以更缓慢的方式持续进展。尽管临床前研究证据充分,但NMDAR阻断剂在中风临床试验中屡屡失败,反映出从动物模型到人体存在较大的转化鸿沟[7]。
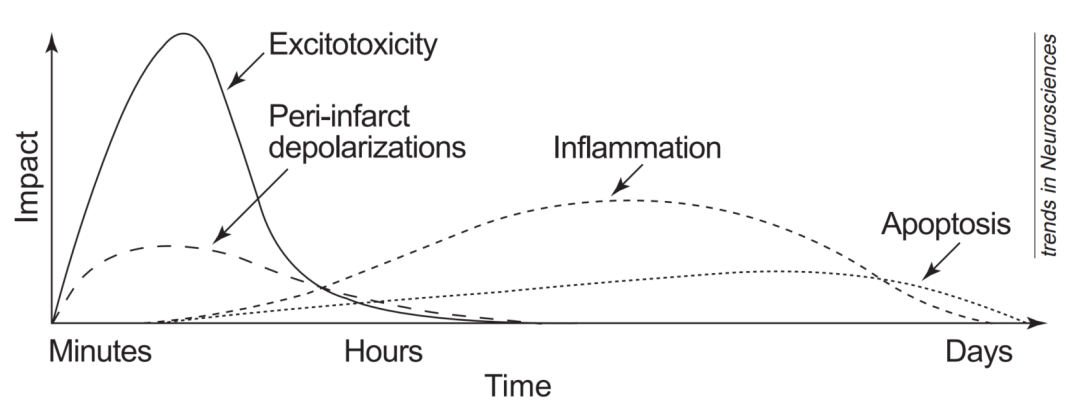
(99)01401-0
兴奋性毒性在脑缺血早期即可对神经元造成严重损害,并引发后续级联反应
神经退行性疾病则代表慢性兴奋性毒性:如在AD中,β-淀粉样蛋白(Aβ)寡聚体通过多个层面破坏谷氨酸稳态——损伤星形胶质细胞EAAT2功能、增强突触外NMDAR活性、扰乱钙稳态。这种轻度但持续的谷氨酸张力升高,虽不立即致死,却可长期损害突触功能、加剧线粒体功能障碍和神经炎症,最终导致突触丢失与神经退行性变[7,10]。
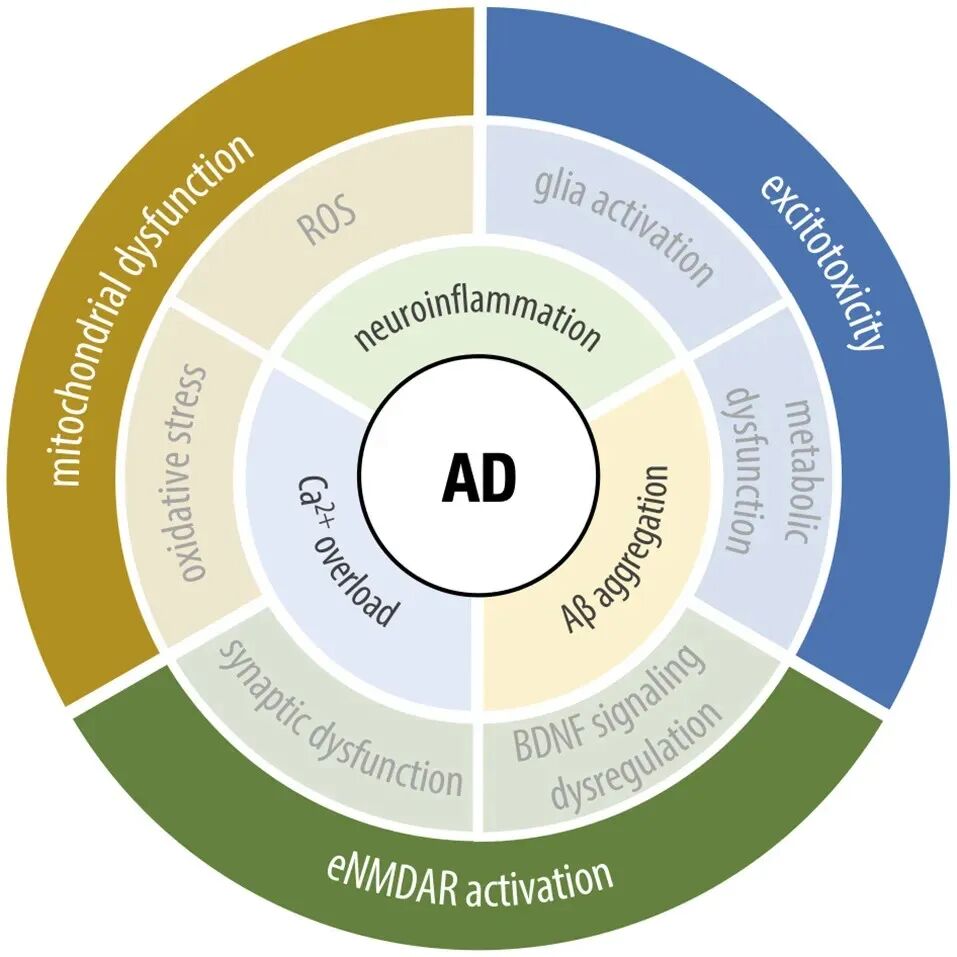
AD中上游病理因素与表型之间的相互影响
此外,兴奋性毒性还参与多发性硬化(少突胶质细胞损伤与脱髓鞘)、癫痫(反复痫样放电与神经元选择性丢失)、青光眼(视网膜神经节细胞死亡)等多种疾病的病理过程[11-13]。
谷氨酸兴奋性毒性靶向药物开发长期受制于模型系统的局限。传统二维原代培养缺乏3D结构与多细胞互作;啮齿类模型在NMDAR亚基组成、发育时序上与人类存在显著差异。对于药物研发而言,缺乏人源的兴奋性毒性模型,是神经保护药物管线推进的核心瓶颈之一。
ACROBiosystems百普赛斯的即用型iPSC来源的背侧前脑类器官(hiPSC-Derived Dorsal Forebrain Organoids)为解决这一问题提供了新的平台。其已确认的功能特征包括:
-
谷氨酸能神经元基础:第57–87天,类器官可检测到vGLUT1⁺谷氨酸能(兴奋性)神经元,并包含CTIP2⁺皮层深层神经元与MAP2⁺成熟神经元,为谷氨酸能通路研究提供人源化细胞基础;
-
多细胞复杂性:包含GFAP⁺星形胶质细胞与OLIG2⁺少突胶质谱系细胞,具备研究谷氨酸稳态调控(如星形胶质细胞介导的转运体摄取)的细胞基础;
-
功能性验证:微电极阵列(microelectrode array, MEA)电生理记录显示5/5类器官具有自发网络活动,FLIPR钙成像可见自发性节律性钙瞬变;谷氨酸与Yoda1处理可诱导神经元过度兴奋(放电频率与活跃电极数显著增加),可用于药物诱导的神经元过度兴奋与兴奋性毒性评价。
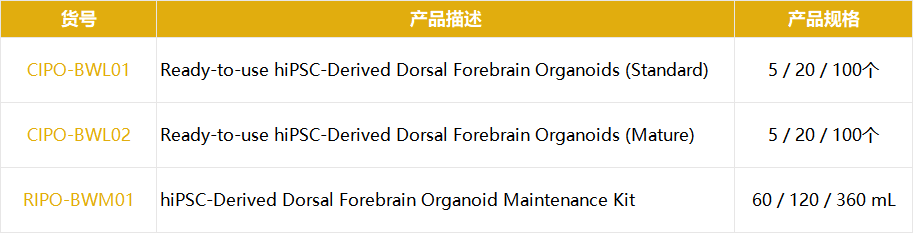
从生理“信使”到病理“毒药”,谷氨酸的转变往往只在一线之间。人源脑类器官模型让研究者得以在更贴近人体的环境中理解这一转变、评估干预策略,为神经保护药物的研发带来新的可能!
参考文献
1.Reiner A, Levitz J. Glutamatergic signaling in the central nervous system: ionotropic and metabotropic receptors in concert[J]. Neuron, 2018, 98(6): 1080-1098. DOI: 10.1016/j.neuron.2018.05.018
2.Hansen K B, Yi F, Perszyk R E, et al. NMDA receptors in the central nervous system[M] receptors: Methods and protocols. New York, NY: Springer New York, 2017: 1-80. DOI: 10.1007/978-1-4939-7321-7_1
3.Lu Y M, Jia Z, Janus C, et al. Mice lacking metabotropic glutamate receptor 5 show impaired learning and reduced CA1 long-term potentiation (LTP) but normal CA3 LTP[J]. The Journal of Neuroscience, 1997, 17(13): 5196-5205. DOI: 10.1523/JNEUROSCI.17-13-05196.1997
4.Malik A R, Willnow T E. Excitatory amino acid transporters in physiology and disorders of the central nervous system[J]. International journal of molecular sciences, 2019, 20(22): 5671. DOI: 10.3390/ijms20225671
5.Dirnagl U, Iadecola C, Moskowitz M A. Pathobiology of ischaemic stroke: an integrated view[J]. Trends in neurosciences, 1999, 22(9): 391-397. DOI: 10.1016/S0166-2236(99)01401-0
6.Hardingham G E, Fukunaga Y, Bading H. Extrasynaptic NMDARs oppose synaptic NMDARs by triggering CREB shut-off and cell death pathways[J]. Nature neuroscience, 2002, 5(5): 405-414. DOI: 10.1038/nn835
7.Yu S P, Jiang M Q, Shim S S, et al. Extrasynaptic NMDA receptors in acute and chronic excitotoxicity: implications for preventive treatments of ischemic stroke and late-onset Alzheimer’s disease[J]. Molecular Neurodegeneration, 2023, 18(1): 43. DOI: 10.1186/s13024-023-00636-1
8.Parsons M P, Raymond L A. Extrasynaptic NMDA receptor involvement in central nervous system disorders[J]. Neuron, 2014, 82(2): 279-293. DOI: 10.1016/j.neuron.2014.03.030
9.Zhou X, Chen Z, Yun W, et al. Extrasynaptic NMDA receptor in excitotoxicity: function revisited[J]. The Neuroscientist, 2015, 21(4): 337-344. DOI: 10.1177/1073858414548724
10.Armada-Moreira A, Gomes J I, Pina C C, et al. Going the extra (synaptic) mile: excitotoxicity as the road toward neurodegenerative diseases[J]. Frontiers in cellular neuroscience, 2020, 14: 90. DOI: 10.3389/fncel.2020.00090
11.Macrez R, Stys P K, Vivien D, et al. Mechanisms of glutamate toxicity in multiple sclerosis: biomarker and therapeutic opportunities[J]. The Lancet Neurology, 2016, 15(10): 1089-1102. DOI: 10.1016/S1474-4422(16)30165-X
12.Barker-Haliski M, White H S. Glutamatergic mechanisms associated with seizures and epilepsy[J]. Cold Spring Harbor perspectives in medicine, 2015, 5(8): a022863. DOI: 10.1101/cshperspect.a022863
13.Firoz M, Shome N, Wong N, et al. Retinal Ganglion Cell Degeneration in Glaucoma: Systematic Review[J]. Bioengineering, 2026, 13(5): 509. DOI: 10.3390/bioengineering13050509
ACROBiosystems
inquiry@acrobiosystems.com
15117918562
(备注:姓名+公司)